
Isabel de Fátima Alvim Braga
Resumo
Havia um pássaro que sabia voar. Avaliava o vento, escolhia galhos, saía quando o ambiente deixava de ser adequado. Um dia foi colocado em uma gaiola. No início batia nas grades. Com o tempo a porta passou a abrir de forma irregular. Dentro, às vezes havia comida e silêncio; às vezes barulho e privação. O pássaro aprendeu que ficar ainda continha a possibilidade de alívio, enquanto sair aumentava o desconforto imediato. Depois de tempo suficiente, mesmo com a porta aberta, ele permanecia. Não porque tivesse esquecido como voar, mas porque o cérebro havia redefinido o que era seguro e possível. Este texto descreve, de forma detalhada, os circuitos que produzem essa redefinição: imprevisibilidade e dopamina, submissão como alívio de cortisol, viés de memória mediado por serotonina, trancas de culpa e vergonha, ocupação do córtex pré-frontal, plasticidade quando a equação muda, e, ao final, a síndrome de Estocolmo como extremo visível do mesmo mecanismo, incluindo o julgamento das vítimas e as versões sutis no cotidiano.
Imprevisibilidade e o sistema de recompensa
A imprevisibilidade é o elemento central que transforma um ciclo ruim em um ciclo difícil de interromper. Quando o reforço positivo — afeto, atenção, cessação da crítica, reconciliação — chega de forma irregular, a área tegmental ventral (VTA) libera dopamina de forma mais intensa na antecipação do que liberaria se o reforço fosse estável. O núcleo accumbens registra essa liberação como sinal forte de que vale a pena continuar buscando. É o mesmo princípio das máquinas de reforço variável estudadas por Skinner e formalizadas nos modelos de erro de predição de recompensa de Wolfram Schultz: a incerteza aumenta a motivação de busca, não a reduz.
Em uma relação abusiva, o cérebro não aprende apenas que “às vezes é bom”. Ele aprende que o próximo momento bom pode chegar a qualquer instante e que a ausência prolongada de oscilação significa ausência da recompensa que o sistema passou a esperar. O resultado prático é que a calma estável passa a gerar desconforto ou sensação de falta, enquanto a oscilação mantém o sistema dopaminérgico ativo e engajado. A pessoa pode descrever uma relação previsível como “sem vida” não porque ela seja objetivamente vazia, mas porque o circuito de predição foi recalibrado.
A imprevisibilidade é o que transforma um ciclo ruim em um ciclo difícil de sair. Quando o abuso ou a crítica vem de forma constante e previsível, o cérebro consegue, com o tempo, antecipar e, em alguns casos, reduzir a busca. Quando o alívio, o afeto ou a “lua de mel” chegam de forma irregular — às vezes depois de pouco tempo, às vezes depois de muito —, o sistema de recompensa (área tegmental ventral → núcleo accumbens) libera mais dopamina na antecipação do que liberaria se o reforço fosse estável. A incerteza aumenta o desejo de continuar procurando o próximo momento bom.
A submissão entra como a resposta que reduz o desconforto mais rápido. Sob o alarme de estresse (cortisol, amígdala ativa), ceder, pedir desculpa, diminuir o próprio movimento ou aceitar a narrativa do outro diminui temporariamente o cortisol e pode liberar um pouco de oxitocina ou dopamina de alívio. O córtex pré-frontal, que deveria avaliar se essa estratégia ainda faz sentido a longo prazo, está parcialmente ocupado pelo alarme. O cérebro registra: “quando eu me submeto, o mal-estar diminui”. Com a repetição, essa associação se fortalece. A pessoa passa a antecipar a necessidade de se submeter antes mesmo de o outro exigir, porque o sistema aprendeu que a submissão é o caminho mais eficiente para o alívio.
O aprisionamento ocorre porque o mesmo cérebro que um dia voava livre (avaliava, saía, reagia) passa a tratar a gaiola como o ambiente onde o alívio ainda é possível. A imprevisibilidade mantém a busca ativa; a submissão oferece a redução do alarme. Juntas, elas redefinem o que o cérebro considera “seguro” ou “possível”. Sair deixa de parecer apenas difícil — passa a parecer, neurologicamente, mais ameaçador do que ficar, porque ficar ainda contém a possibilidade do próximo alívio, enquanto sair contém a certeza do desconforto sem a promessa de recompensa.
Submissão como estratégia de alívio
Sob o alarme de estresse — cortisol elevado, amígdala hiperativa, eixo hipotálamo-hipófise-adrenal mobilizado —, o córtex pré-frontal dorsolateral perde eficiência. Avaliar custos de longo prazo, gerar alternativas claras ou sustentar uma posição fica mais difícil porque os recursos atencionais e executivos estão ocupados pelo alarme. Nesse estado, a ação que reduz o desconforto mais rapidamente tende a ser reforçada.
Ceder, pedir desculpa, diminuir o próprio movimento, aceitar a narrativa do outro ou antecipar a necessidade de se submeter diminui temporariamente o cortisol e pode liberar algum sinal de dopamina ou oxitocina de alívio. O cérebro registra a associação com precisão: submissão reduz o alarme. Com a repetição, a pessoa passa a executar a submissão antes mesmo de uma exigência explícita, porque o sistema já previu que essa é a via mais eficiente para o alívio de curto prazo. A submissão deixa de ser apenas resposta a uma ameaça externa e passa a ser uma estratégia interna de regulação emocional.
A redefinição do que o cérebro chama de segurança
Depois de tempo suficiente no ciclo, o sistema de predição recalibra o que considera estado esperado. Em ambientes estáveis, a ausência de drama não gera sinal de erro; a previsibilidade é tratada como segura. No ciclo abusivo, o estado “normal” passa a incluir oscilação. Quando o ambiente permanece calmo por tempo demais, o núcleo accumbens e a área tegmental ventral registram ausência da recompensa que o sistema aprendeu a esperar. O desconforto resultante é interpretado como falta de vínculo ou como sinal de que algo está errado.
A segurança deixa de ser ausência de ameaça e passa a ser a presença intermitente de alívio, mesmo que esse alívio venha da mesma fonte que gera o estresse. A submissão continua sendo a ação que ainda produz alguma redução de cortisol e algum sinal dopaminérgico ou oxitocinérgico. O córtex pré-frontal, ocupado pelo alarme residual, reforça a associação. O pássaro não permanece na gaiola apenas por medo das grades. Ele permanece porque o circuito aprendeu que ficar ainda contém a possibilidade de alívio, enquanto a calma fora dela não corresponde mais ao que o sistema espera como estado normal.
Por que a pessoa parece cega?
Não é falta de inteligência. Vários mecanismos reduzem a clareza:
- Ocupação do córtex pré-frontal: sob estresse crônico e alarme constante, a avaliação de custos e benefícios de longo prazo fica prejudicada. A pessoa “sabe” em momentos de calma, mas no momento do ciclo o raciocínio frio perde força.
- Dissonância cognitiva: o cérebro detesta a contradição “essa pessoa me faz mal” + “eu continuo aqui / eu amo essa pessoa”. Para reduzir o desconforto, ele minimiza o abuso, justifica, culpa a si mesmo ou foca nos momentos bons. Isso é uma forma de autorregulação, não de estupidez.
- Memória e viés: as memórias dos momentos de alívio e reconciliação ficam mais salientes (reforço dopaminérgico e consolidação emocional). As memórias do abuso podem ser fragmentadas ou minimizadas. A percepção da relação fica distorcida pelo peso desigual das lembranças.
- Sistema de apego ativado: oxitocina e circuitos de vínculo priorizam a manutenção da conexão, mesmo quando ela é a fonte de estresse. Em contextos de ameaça, o cérebro pode tratar o vínculo como “segurança relativa” em vez de risco.
- Desamparo aprendido parcial: depois de várias tentativas de mudar o padrão sem sucesso, o sistema reduz a geração de alternativas de saída
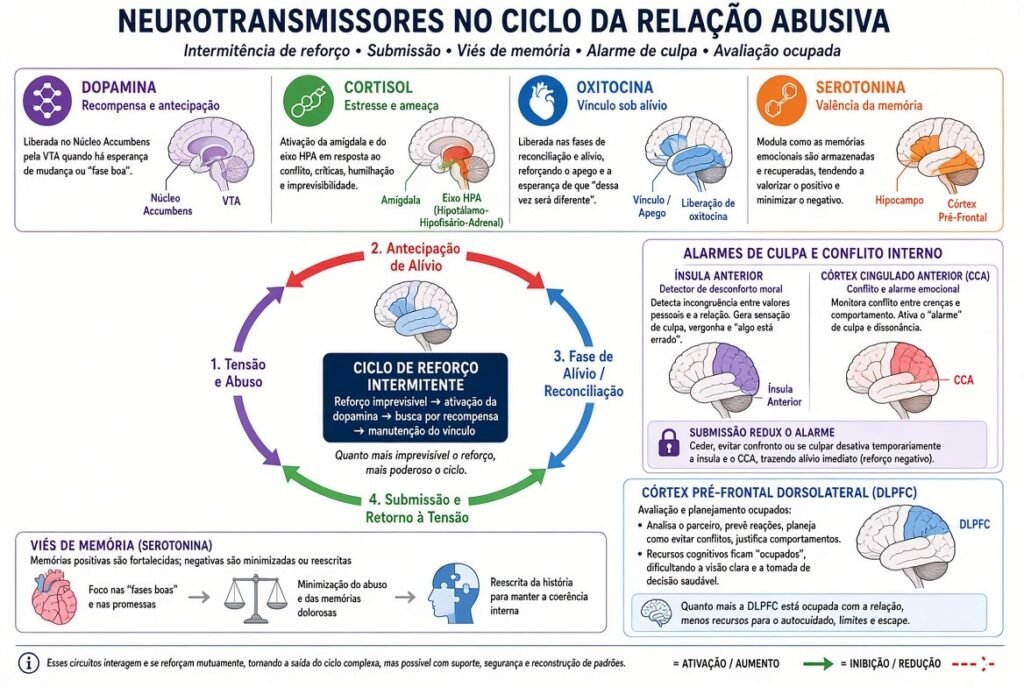
A montanha-russa funciona porque o cérebro é extremamente sensível a recompensa imprevisível. O abuso eleva o estresse; a reconciliação oferece alívio dopaminérgico e oxitocinérgico. Esse ciclo treina o sistema a buscar a mesma pessoa tanto para o medo quanto para o conforto. A “cegueira” é o resultado de córtex pré-frontal parcialmente offline, dissonância cognitiva resolvida por minimização, e memórias emocionalmente enviesadas. Não é que a pessoa não veja; é que o circuito que deveria permitir ver com clareza está ocupado gerenciando o alarme e o desejo de alívio.
Memória, serotonina e a distorção da percepção
A montanha-russa não é “amor intenso”. É um ciclo de reforço intermitente que sequestra o sistema de recompensa, o sistema de apego e o sistema de estresse ao mesmo tempo. O cérebro trata a relação como algo que vale a pena perseguir porque o alívio e a recompensa chegam de forma imprevisível — exatamente o padrão que mais prende.
O ciclo neuroquímico
- Fase de tensão / abuso
Cortisol e noradrenalina sobem. A amígdala fica hiperativa (alarme de ameaça). O córtex pré-frontal (avaliação racional, planejamento, freio) perde eficiência. A pessoa fica em hipervigilância ou em estado de congelamento parcial. - Fase de reconciliação / “lua de mel”
O outro volta com afeto, desculpa, atenção ou sexo. Há liberação de dopamina (recompensa e alívio) e oxitocina (vínculo). O desconforto do cortisol diminui. O cérebro registra: “essa pessoa é a fonte do alívio”. - Imprevisibilidade
Como o reforço positivo não é constante, o sistema de predição de recompensa (área tegmental ventral → núcleo accumbens) dispara mais forte do que em relações estáveis. É o mesmo mecanismo das máquinas caça-níqueis: a incerteza aumenta o desejo e a busca.
O resultado é um vínculo em que o cérebro associa a mesma pessoa tanto à ameaça quanto ao alívio. Cortisol + oxitocina + dopamina formam um laço difícil de quebrar só com “vontade”.
A serotonina não “cria felicidade”. Ela influencia:
- o quanto uma memória é consolidada de forma estável;
- a facilidade de recuperá-la;
- o viés emocional com que ela é relembrada (em depressão, baixa sinalização 5-HT está associada a maior recall de material negativo e dificuldade de atualizar memórias);
- a integração ou segmentação de experiências (em interação com dopamina e noradrenalina).
Em outras palavras: a serotonina ajuda a regular como o cérebro trata a memória — se ela gruda mais, se é mais fácil de acessar, se carrega mais peso emocional negativo ou se pode ser reatualizada. Isso explica por que alterações serotoninérgicas (depressão, SSRIs, depleção de triptofano) mudam o desempenho em tarefas de memória e a qualidade subjetiva das lembranças, sem que isso se reduza a “mais ou menos felicidade”.
A serotonina modula a consolidação e a recuperação de memórias declarativas e emocionais por meio de projeções dos núcleos da rafe para o hipocampo e a amígdala. Ela não é a molécula da felicidade. Ela participa da regulação de quais memórias ficam mais acessíveis e com que valência emocional. Revisões sistemáticas mostram que alterações no tônus serotoninérgico afetam de forma diferente codificação e consolidação, e que déficits de consolidação dependente de síntese proteica são particularmente visíveis em tarefas de reconhecimento de objetos e memória verbal.
No ciclo de montanha-russa, os momentos de reconciliação tendem a ser consolidados com maior saliência emocional porque coincidem com queda de cortisol e liberação de dopamina e oxitocina. As memórias do abuso podem ser menos integradas ou mais facilmente minimizadas: o alto estresse fragmenta a codificação hipocampal e a dissonância cognitiva empurra o córtex pré-frontal medial a reavaliar o evento de forma menos negativa. O resultado é um viés de recuperação. Quando a pessoa tenta lembrar a relação, as cenas de alívio e de “prova de que ainda há vínculo” vêm com mais facilidade e peso emocional do que o custo acumulado. A percepção fica distorcida não por falta de dados objetivos, mas porque o sistema de memória, sob influência serotoninérgica e de reforço intermitente, privilegia o que reduziu o desconforto.
Culpa e vergonha como trancas adicionais da gaiola
As técnicas que induzem culpa e vergonha funcionam como trancas extras. Frases como “eu fiz tudo por você”, “você tem mais que eu” ou “eu não sou ninguém sem você” ativam a ínsula anterior (consciência de desconforto e de erro em relação ao outro) e o córtex cingulado anterior (monitoramento de conflito entre o ato realizado e a norma social ou o impacto no similar). Esse alarme ocupa recursos atencionais e reduz ainda mais a disponibilidade do córtex pré-frontal dorsolateral para uma avaliação proporcional da assimetria.
A submissão, que já reduzia o cortisol do ciclo de estresse, passa também a reduzir o desconforto da ínsula e do cingulado. O cérebro aprende uma segunda associação: submeter-se alivia não só o medo da perda de vínculo, mas também a sensação de estar em dívida ou de estar fazendo mal ao outro. Sair da relação deixa de ser apenas perder o próximo alívio possível; passa a carregar o peso adicional de violar uma norma interna que o próprio circuito de culpa construiu. A gaiola ganha uma tranca que não está na porta física, mas no monitoramento de erro social que continua disparando quando a ideia de saída é considerada.
Quando a porta está aberta
Mesmo quando a possibilidade real de sair existe, o sistema de predição ainda espera o próximo reforço dentro do ambiente conhecido. A amígdala e o eixo do estresse associam a saída a aumento de desconforto: perda da fonte de alívio e ativação de culpa. O córtex pré-frontal, ainda parcialmente ocupado por esses sinais, gera menos alternativas claras de ação. A pessoa pode ver a porta aberta e, ao mesmo tempo, sentir que atravessá-la é mais ameaçador do que permanecer.
Não se trata de não enxergar a saída. Trata-se de o circuito que permitiria usar essa informação estar competindo com alarmes mais imediatos de recompensa esperada e de erro moral. O pássaro não perdeu a capacidade de voar. Ele aprendeu, dentro da gaiola, que o movimento de sair aumentava o desconforto de curto prazo enquanto ficar ainda continha a possibilidade de alívio. A chave existe. O que falta, no momento do ciclo ativo, é a disponibilidade do córtex pré-frontal para usá-la sem ser imediatamente sequestrado pelo desconforto esperado.
O que o cérebro aprendeu e o que ainda é possível
O padrão é forte porque foi reforçado por múltiplos sistemas ao mesmo tempo: imprevisibilidade (dopamina na VTA e núcleo accumbens), alívio condicionado (queda de cortisol acompanhada de oxitocina), redução de culpa (ínsula anterior e córtex cingulado anterior) e viés de memória (modulação serotoninérgica). Esses circuitos, porém, são plásticos. Quando o reforço intermitente deixa de chegar de forma consistente e as demandas que ativam culpa diminuem, a predição de recompensa dentro da gaiola enfraquece gradualmente.
O córtex pré-frontal dorsolateral recupera espaço para reavaliar custos e benefícios com menos interferência do alarme. A ínsula e o cingulado deixam de disparar com a mesma intensidade diante da ideia de saída. A neuroplasticidade não apaga o aprendizado antigo de um dia para o outro, mas permite que a percepção da porta aberta passe a competir com o hábito de permanecer. O que muda não é a existência da chave. É a disponibilidade do circuito que consegue usá-la quando os alarmes que a sequestravam perdem força.
Quem não sente o alarme da mesma forma
Algumas pessoas entram menos ou saem mais rápido do mesmo ciclo. Em geral, apresentam menor sensibilidade do sistema de predição de recompensa a reforços altamente imprevisíveis nesse contexto específico, ou menor ativação da ínsula anterior e do córtex cingulado anterior diante das mesmas frases de dívida e ameaça de dano. O córtex pré-frontal permanece mais disponível para registrar a assimetria real e gerar alternativas de ação.
Não se trata de superioridade moral ou de ausência de sentimento. Trata-se de diferença na calibração dos circuitos de recompensa intermitente e de monitoramento de erro social. O mesmo ambiente que aprisiona um cérebro recalibrado para oscilação e culpa pode ser avaliado com mais clareza e deixado por outro cérebro cujo alarme não ocupa os recursos executivos da mesma maneira. A diferença ajuda a explicar por que algumas pessoas descrevem o ciclo como irresistível enquanto outras o veem como evitável desde cedo.
Síndrome de Estocolmo: o extremo visível de um mecanismo comum
A síndrome de Estocolmo é o nome dado quando uma pessoa em cativeiro desenvolve vínculo positivo, defesa ou até afeto em relação ao sequestrador. O caso de 1973 deu o nome. Na narrativa pública, isso aparece como algo extremo, raro e quase incompreensível: “como alguém pode se apegar a quem a ameaça?”. O mecanismo, porém, não é excepcional. Ele é uma versão intensa do mesmo processo descrito ao longo deste texto.
No cativeiro clássico, a vítima depende do sequestrador para necessidades básicas. O sequestrador alterna ameaça explícita com pequenos gestos de não-agressão ou de aparente cuidado. Sob alto cortisol e amígdala ativa, o cérebro registra que a fonte de ameaça é também a fonte do alívio momentâneo. Dopamina e oxitocina são liberadas nos momentos de redução de perigo. O córtex pré-frontal, ocupado pelo alarme de sobrevivência, reduz a avaliação de alternativas de longo prazo. Com o tempo, o sistema associa o sequestrador tanto ao perigo quanto à possibilidade de segurança relativa. Defender ou se apegar a ele passa a ser, neurologicamente, uma forma de reduzir o desconforto imediato.
O mesmo circuito opera em abusos menores e repetidos. Não é necessário sequestro armado. Basta dependência relativa — emocional, financeira ou social — e alívio que chega de forma intermitente depois de períodos de tensão ou desvalorização. O cortisol sobe na fase ruim. Dopamina e oxitocina aparecem na reconciliação. A ínsula e o cingulado anterior podem ser ativados por culpa induzida. O córtex pré-frontal perde espaço para avaliação clara. A pessoa minimiza, justifica ou se apega aos momentos bons exatamente como no cativeiro clássico. A diferença é de intensidade e de visibilidade, não de mecanismo fundamental. O que chamamos de síndrome de Estocolmo é o extremo em que a dependência é total e a ameaça é explícita. O cotidiano abusivo usa a mesma lógica em dose menor e mais disfarçada.
Quando o caso é extremo e público, é fácil condenar ou patologizar a vítima: “ela deveria ter fugido”, “como não viu?”, “isso é síndrome, não é normal”. O julgamento protege quem observa. Ele cria distância: isso acontece com os outros, em situações radicais, não comigo. Ao tratar o fenômeno como exceção radical, evitamos perguntar onde versões sutis do mesmo padrão existem nas nossas próprias relações. No dia a dia, a imprevisibilidade e a submissão aparecem em formas menores: o ambiente de trabalho em que o reconhecimento chega de forma irregular depois de críticas duras; a dinâmica familiar em que o silêncio ou a expressão de decepção obtém conformidade e depois oferece afeto; a relação em que um dos lados precisa se diminuir ou pedir desculpa para restaurar a paz, mesmo quando a demanda é assimétrica. Nesses casos, o cérebro também aprende que ceder reduz o desconforto mais rápido do que questionar. Julgar apenas as vítimas de casos extremos permite continuar o padrão sutil sem examiná-lo. A gaiola pequena e cotidiana também tem porta. A diferença é que ela é mais fácil de não ver quando estamos ocupados julgando a gaiola dos outros.
O pássaro não esqueceu como voar. Ele aprendeu, dentro da gaiola, que voar aumentava o desconforto imediato e que ficar ainda continha a possibilidade de alívio. A imprevisibilidade manteve a busca ativa por meio da dopamina. A submissão ofereceu a redução do alarme de cortisol. A memória, modulada pela serotonina, privilegiou os momentos de reconciliação.
A culpa e a vergonha, via ínsula e cingulado anterior, acrescentaram trancas internas. O córtex pré-frontal permaneceu ocupado. Quando essa equação muda — quando o reforço intermitente enfraquece e o alarme de culpa deixa de ser alimentado da mesma forma —, a porta que já estava aberta passa a ser usada. A redefinição do mundo não é permanente. Ela é o resultado de um aprendizado eficiente em um ambiente específico. E aprendizados, por mais fortes que sejam, podem ser atualizados quando as condições que os sustentam deixam de existir.
Amar é intranstivo: o amor por reconhecimento jamais exigiria uma gaiola. (Leia mais sobre amor no artigo “Amar é intransitivo – Lições da minha mãe sobre nunca se esforçar por amor“.
Isabel Braga
Referências
Carnes, P. The Betrayal Bond: Breaking Free of Exploitive Relationships. Health Communications, 1997.
Dutton, D. G., & Painter, S. L. Emotional attachments in abusive relationships: A test of traumatic bonding theory. Violence and Victims, 1993.
Schultz, W. Dopamine reward prediction-error signalling: a two-component response. Nature Reviews Neuroscience, 2016.
Revisões sobre serotonina e memória declarativa, incluindo efeitos diferenciais de tônus 5-HT em codificação e consolidação (ex.: ScienceDirect systematic reviews, 2022).
Meta-análises de neuroimagem sobre culpa e vergonha (ínsula anterior, córtex cingulado anterior, junção temporoparietal).
Literatura sobre trauma bonding, reforço intermitente, dissonância cognitiva e supressão do córtex pré-frontal sob estresse crônico.

 Português do Brasil